նախընտրելի դարձնել
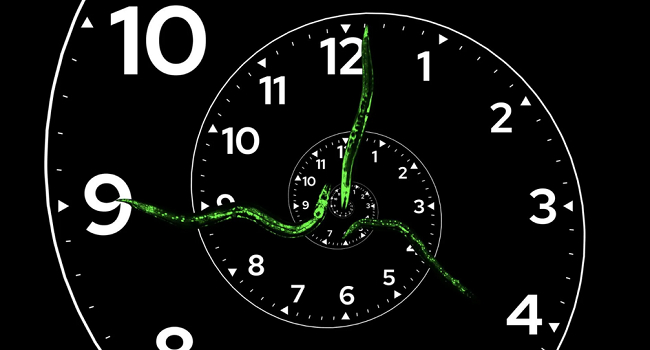
Cold Spring Harbor լաբորատորիայի հետազոտողները հայտնաբերել են մի մեխանիզմ, որը կարելի է համարել C. elegans կլոր որդի կենտրոնական «զարգացման ժամացույց»,- գրել է Science Daily-ն։
Աշխատանքը բացատրում է, թե ինչպես են բջիջները համակարգում օրգանիզմի զարգացման խիստ կարգավորված փուլերը՝ ապահովելով անցումը աճի մի փուլից մյուսին՝ ճիշտ հաջորդականությամբ և ճշգրիտ ժամանակացույցով։
Ավելի վաղ գիտնականների նույն խումբը ցույց էր տվել, որ C. elegans-ի զարգացումը կարգավորվում է ոչ թե գեների անընդհատ ակտիվացմամբ, այլ գեների արտահայտման հաջորդական իմպուլսներով։ Սակայն այդ իմպուլսների ճշգրիտ ռիթմը սահմանող և դրանց տեղաշարժը կանխող մեխանիզմը մնում էր անհասկանալի։
Նոր հետազոտությունը պարզել է, որ այս գործընթացում հիմնական դեր են խաղում երկու սպիտակուցներ՝ MYRF-1-ը և LIN-42-ը։ Միասին դրանք կազմում են կարգավորող հետադարձ կապի օղակ, որը գործում է որպես մի տեսակ կենսաբանական «ժամացույց», համակարգելով գենետիկական գործունեության յուրաքանչյուր փուլի սկիզբը և ավարտը։ Հեղինակների խոսքով՝ սա այս տեսակի ինքնուրույն չկրկնվող կենսաբանական ժամացույցանման մեխանիզմի առաջին նկարագրված օրինակն է։ Ի տարբերություն դասական ցիրկադային ռիթմերի, որոնք կրկնվում են ցիկլիկ կերպով, այս մեխանիզմը գործում է որպես իրադարձությունների միասնական հաջորդականություն՝ ապահովելով օրգանիզմի առաջադիմող զարգացումը։
MYRF-1-ը գործում է որպես զարգացման յուրաքանչյուր փուլի մեկնարկային ազդանշան և միաժամանակ մասնակցում է ստուգիչ կետերում՝ ֆիքսելով դրա ավարտը։ Հաջորդ «գենետիկ ազդակի» ակտիվացումից հետո այն ակտիվացնում է LIN-42 սպիտակուցը, որը կարգավորում է գեների արտահայտման ինտենսիվությունն ու տևողությունը։ Միասին դրանք ապահովում են զարգացման ճշգրիտ հաջորդականություն և կանխում են փուլերի միջև անցումների խափանումները։
Փորձերը ցույց են տվել, որ MYRF-1-ի արգելափակումը հանգեցնում է զարգացման ծրագրի լիակատար խափանման. օրգանիզմը չի կարողանում անցնել աճի հաջորդական փուլերով: Սա ընդգծում է այս սպիտակուցի կարևոր դերը որպես կարգավորող համակարգի կենտրոնական տարր:
Հետազոտողները նաև օգտագործել են մոլեկուլային մեթոդներ, ԴՆԹ և սպիտակուցի հաջորդականացում, ինչպես նաև կառուցվածքային մոդելավորման գործիքներ, այդ թվում՝ AlphaFold, համակարգի բաղադրիչների միջև փոխազդեցությունները պարզաբանելու համար:
Բաց մնացած հարցերից մեկն այն է, թե ինչպես են առանձին բջջային «ժամացույցները» սինքրոնացվում միմյանց հետ: Չնայած MYRF-1/LIN-42 մեխանիզմն առկա է օրգանիզմի բոլոր բջիջներում, զարգացման մակարդակում այն գործում է համաձայնեցված՝ ստեղծելով միասնական աճի ռիթմ: Գիտնականները դեռևս չգիտեն, թե արդյոք բջիջների միջև ակտիվ հաղորդակցություն է տեղի ունենում այս սինքրոնացումը պահպանելու համար:
Այս համակարգերի ընկալումը հետագայում կարող է օգնել բացատրել զարգացման խանգարումների բնույթը և բջջային աճի և դիֆերենցիացիայի խանգարումների հետ կապված մի շարք գենետիկական հիվանդություններ: Հետազոտությունը նաև ընդլայնում է մեր պատկերացումներն այն մասին, թե ինչպես են բազմաբջիջ օրգանիզմները համակարգում զարգացման բարդ ծրագրերը ժամանակի մեջ: